Einige Überlegungen, die zwei aktuelle Studien miteinander verknüpfen.
Ein Mensch verbraucht etwa hundert Watt Leistung. Diese Zahl an sich stellt für die klassische Physik kein Rätsel dar: Es handelt sich um Nahrungsenergie, die – größtenteils in Wärme – mit einer bekannten Effizienz umgewandelt wird.
Das eigentliche Problem liegt eine Größenordnung tiefer. Ein Mitochondrium wandelt aus der Nahrung gewonnene Reduktionskraft in ATP um, und zwar mit einem Wirkungsgrad, der für einen unruhigen biologischen Molekülmotor bereits hoch erscheint. Das Elektronentunneln in den Atmungskomplexen ist eine alte Idee.
Neuer und interessanter ist die Möglichkeit, dass das Mitochondrium nicht lediglich aus einem „Sack“ von Enzymen und einem Genom besteht, sondern ein gekoppeltes elektromagnetisches System ist, in dem Membrangeometrie, Lipidschwingungen, die Elektrostatik der Nukleinsäuren und die ATP-Synthese auf ein und demselben Gebiet stattfinden.
Dies ist keine Übertreibung. Es handelt sich um eine genauere Interpretation zweier Arten von Belegen, die üblicherweise getrennt voneinander betrachtet werden.
Was wir bereits „wissen“
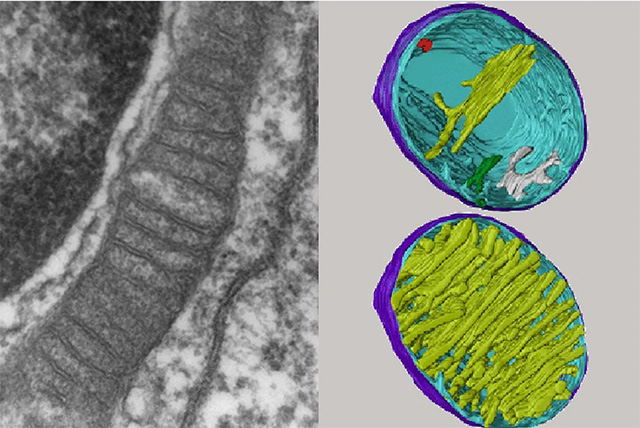
Mitochondrien sind gefaltete innere Membranen. Die Cristae (gelb dargestellt) sind keine Verzierung.
Ihre Krümmung, ihre Proteinanordnung und ihre Lipidzusammensetzung bestimmen die lokale Elektrostatik, Protonenmulden und Hydratationshüllen. Dieselbe Membran trägt die Komplexe I–IV, Ubichinon, Cytochrom c und die ATP-Synthase. Dasselbe Kompartiment enthält zirkuläre mtDNA, mitochondriale rRNA, tRNA und mRNA. (Vgl. Biochim Biophys Acta)
Auch Nukleinsäuren sind elektrisch nicht neutral. Ein Zucker-Phosphat-Grundgerüst bildet eine sich wiederholende, hoch elektronegative Schiene. Basen überlagern sequenzspezifische Teil ladungen. RNA ist mit ihrer 2′-OH-Gruppe polarer, stärker hydratisiert und konformationsflexibler als DNA.
Elektrostatik wie aus dem Lehrbuch
Eine Perspektive in „Quantum Reports“ geht noch einen Schritt weiter: Diese strukturierte Umgebung könne eine kurze vibronische Vermischung ermöglichen – bei der Schwingung und elektronische Verteilung kurzzeitig untrennbar miteinander verbunden sind –, bevor es zur Dekohärenz kommt. Dieser letzte Schritt ist eine Hypothese. Die Architektur, die diese Hypothese plausibel macht, ist es jedoch nicht.
Ein bioRxiv-Preprint aus dem Jahr 2026 berichtet von einem Merkmal im mittleren Infrarotbereich nahe 71 THz in lebenden Zellen, lebendem Gewebe und isolierten Mitochondrien, das verschwindet, wenn die Struktur zerstört wird. Nahegelegene Peaks sind auf CO₂ zurückzuführen.
Die 71-THz-Schulter lässt sich nicht eindeutig einem einzelnen katalogisierten biomolekularen Modus zuordnen. Die Autoren modellieren sie als Lichtkopplung an Lipid-C–H-Streckungen in intakten Cristae, wodurch eine bekannte ~87-THz-Streckung aufgespalten wird. Sie berichten zudem, dass eine Stimulation im mittleren Infrarotbereich (IR) in diesem Frequenzfenster die ATP-Produktion verändern kann.

Betrachten Sie die Formulierung „Quantenüberlagerung eines Mitochondriums“ als Interpretation. Betrachten Sie den empirischen Kern wie folgt: Eine intakte, lebende mitochondriale Struktur weist eine optische/vibratorische Signatur auf, die gemahlenes Pulver nicht aufweist, und diese Signatur liegt in einem Frequenzband, das die ATP-Produktion beeinflussen kann.
Diese beiden fundierten Erkenntnisse werfen bereits eine Frage auf. Wenn sich die Lipide der Cristae bei Frequenzen im Terahertz- bis mittleren IR-Bereich an Licht koppeln können und wenn Nukleinsäuren anisotrope elektrostatische Objekte sind, die sich innerhalb derselben Organelle befinden, warum sollten wir dann weiterhin von „Membran-Bioenergetik“ und „mitochondriale Genexpression“ sprechen, als handele es sich um gemietete Räume?
Wie die Kopplung tatsächlich funktionieren könnte
Beginnen wir mit der Geometrie.
Die Cristae konzentrieren die Ladung. Das Potential der inneren Membran liegt in der Größenordnung von 150–180 mV über eine Strecke von wenigen Nanometern – ein für molekulare Verhältnisse enormes Feld.
Das Wasser in dieser Spalte ist kein „Bulk-Wasser“. Cardiolipin und andere konische Lipide bevorzugen Krümmungen und ordnen Protonen und Ionen an. ATP-Synthase-Dimere befinden sich an scharfen Biegungen.
Der Elektronentransport ist ein Vektor, keine „Suppe“.


Bringen Sie nun Nukleinsäuren in dieses Feld ein. Die mtDNA ist in Nukleoiden an die innere Membran gebunden. Transkription und Translation finden in der Nähe der Atmungskette statt, nicht in einem elektrisch neutralen Nebenraum.
Mitochondriale rRNA und mRNA sind Polyelektrolyte. Ihre Ladung im Grundgerüst, die elektrostatischen Eigenschaften ihrer Furchen und ihre Hydratation werden dasselbe lokale Potential wahrnehmen wie die Membranproteine.
Eine Sequenz ist nicht nur eine Codonfolge; sie ist ein Muster aus Dipolen und Polarisierbarkeiten, das auf eine geladene Schiene gelegt ist.
Eine kurzlebige vibronische Überlagerung auf DNA oder RNA müsste nicht einmal Millisekunden überdauern, um von Bedeutung zu sein. Die Biologie nutzt bereits Zeitfenster im Bereich von Femtosekunden bis Pikosekunden bei der Photosynthese und, wohl auch, bei den Tunnelierschritten der Atmung.
Eine kurze Vermischung von Schwingungs- und Elektronenkoordinaten könnte die Basenstapelung, ein Wobble-Paar, eine Pause im Mitoribosom (mitochondriales Ribosom) oder das Andocken eines entstehenden Proteins an die innere Membran beeinflussen.
Anisotropie spielt eine Rolle: Eine kleine chemische Veränderung – eine zusätzliche Methylgruppe, eine andere Zuckerfaltung, eine andere Hydratation der Rille – stört kein einheitliches Kontinuum.
Es stört eine ausgerichtete Landschaft.
Die Membranseite derselben Landschaft ist die 71-THz-Geschichte. Wenn intakte Cristae einen kollektiven Lipid-Licht-Modus unterstützen, ist dieser Modus eine Eigenschaft der Organisation und nicht isolierter CH₂-Gruppen.
Zerstören Sie die Faltung, und der Modus geht verloren.
Genau das erwartet man von einer architektonischen Resonanz. Die ATP-Modulation durch mittleres Infrarot erscheint dann nicht mehr als zufälliges Erwärmungsartefakt, sondern gleicht vielmehr einem Regler für dieselbe Architektur: Sie beeinflussen das Feld, in dem sich sowohl die Syntheseenzyme als auch die benachbarten Nukleinsäuren befinden.
Der Elektronentransport schließt den Kreis. Die Tunnellierungsraten hängen von der Entfernung, der Antriebskraft und dem dazwischenliegenden Medium ab. Das dazwischenliegende Medium besteht aus Protein, Lipid, Wasser und der elektromagnetischen Umgebung der Crista.
Verfügt diese Umgebung über einen kollektiven Modus im mittleren Infrarotbereich, ist das „Medium“ keine statische Dielektrizitätskonstante. Es ist ein abstimmbares Bad. Energieumwandlung und Information in der mtDNA würden dann einen physikalischen Kanal teilen, anstatt lediglich eine Adresse zu teilen.
Warum ist das eine revolutionäre Verknüpfung?
Erstens würde sich dadurch die Bedeutung des Begriffs „Genom“ innerhalb eines Mitochondriums ändern. Die Sequenz würde weiterhin Proteine kodieren.
Sie würde zudem ein elektrostatisches und schwingungsfähiges Objekt kodieren, das in einer Hochfeldmembran existieren muss. Mutationen, Modifikationen und heterologe RNAs würden nicht nur anhand der Codon-Tabelle und der angeborenen Immunität beurteilt, sondern auch danach, ob sie ein Feld verstimmen.
Zweitens würde dies die Bioenergetik verändern. Die ATP-Synthase wäre kein Rotationsmotor, der an eine passive Doppelschicht angeschraubt ist. Sie wäre vielmehr ein Motor, der in einer resonanten, geladenen und hydratisierten Geometrie sitzt, deren optische Moden Teil des Mechanismus sind. Wirkungsgrade, die „zu gut“ erscheinen, wären kein Skandal mehr, sondern würden zu einem Hinweis werden.
Drittens würde dies die Intervention verändern. Medikamente, Licht, Wärme, modifizierte Nukleotide und membranaktive Lipide wären nicht länger getrennte Instrumentarien.
Ein Nukleosidanalogon, das die RNA-Stapelung leicht verschiebt, könnte in diesem Szenario mit der Elektrostatik der Cristae interagieren. Denken Sie einmal darüber nach.
Ein Impuls im mittleren Infrarotbereich, der mit den CH-Moden der Lipide interagiert, könnte das Verhalten der Nukleoide beeinflussen. Denken Sie an Nebenwirkungen, wenn von „Therapie“ die Rede ist.
Viertens würde dies zu experimenteller Bescheidenheit zwingen. Die richtigen Messungen beschränken sich nicht nur auf den Sauerstoffverbrauch und Western Blots.
Dazu gehören frequenzaufgelöste Optik an lebenden, strukturell intakten Organellen; die elektrostatische Kartierung von Nukleoiden in situ; sowie Tests, die die Geometrie aufbrechen, ohne dabei sofort jedes Enzym zu zerstören, um zu erkennen, welche Funktionen zusammenwirken.
Nichts davon setzt die Annahme voraus, dass Mitochondrien Quantencomputer sind. Es erfordert vielmehr, ernst zu nehmen, dass das Leben eine Organelle geschaffen hat, in der die Membran das Feld ist, die Nukleinsäuren in diesem Feld liegen und die Energiemaschinen selbst das Feld sind.
Sollte dies auch nur zur Hälfte zutreffen, ist das Mitochondrium nicht die Batterie der Zelle. Es ist das kompakteste elektromagnetische Gerät der Zelle – und wir haben bisher lediglich das Etikett auf dem Gehäuse gelesen.
Und noch ein Absatz, der auf einer weiteren Arbeit mit dem Titel Myelin: A possible proton capacitor for energy storage during sleep and energy supply during wakefulness basiert (Myelin: Ein möglicher Protonenkondensator zur Energiespeicherung während des Schlafs und zur Energieversorgung im Wachzustand). (Vgl. Progress in Biophysics and Molecular Biology)
Wenn intakte mitochondriale Falten einen optischen/schwingungsbezogenen Modus aufweisen, der mit ATP in Wechselwirkung treten kann, und wenn Myelin dieselben Protonen speichern kann, nachdem es sich mitochondriale Hardware ausgeliehen hat, dann ist „Batterie“ auf beiden Ebenen das falsche Substantiv.
Die Zelle hat ein Feldgerät geschaffen und anschließend eine Variante davon um die Axone herum angeordnet.
Schlaf ist in diesem Bild nicht bloß Ruhe. Er ist der Ladezyklus einer elektromagnetischen Architektur, die wir bisher so beschrieben haben, als handele es sich lediglich um Biochemie.
Quelle: Unacceptable Jessica
Quellen: PublicDomain/PRAVDA TV am 12.10.2026